Lsdia1が巻き方向に関わる
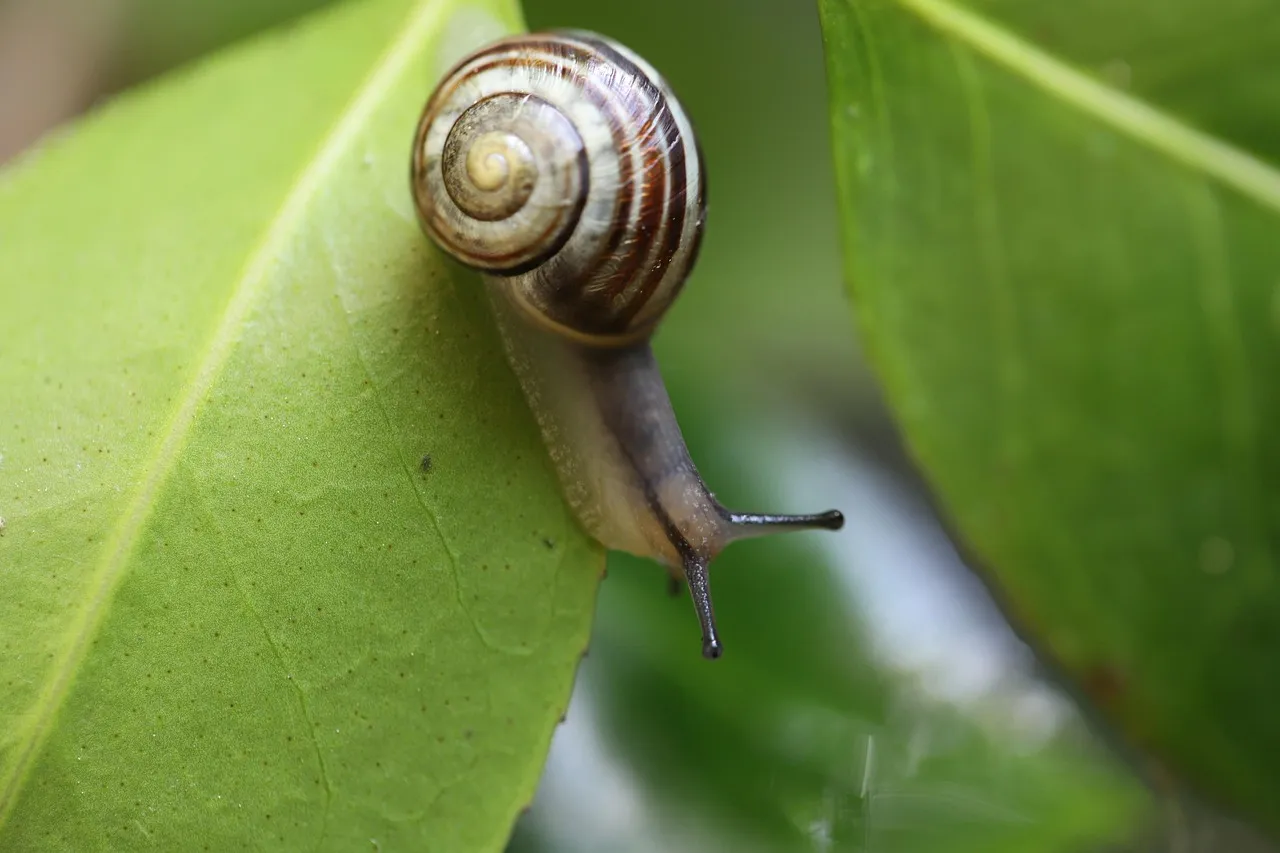
淡水産のカタツムリ、モノアラガイでは、殻の巻き方向に遺伝子「Lsdia1」が関わっています。研究チームはゲノム編集技術CRISPRでこの遺伝子を変異させ、機能しなくなると左巻きの子が生まれることを確かめました。
巻き方向の違いは成体になってから生じるのではなく、胚の段階ですでに現れます。Lsdia1には、母親の遺伝子型が子の巻き方向を決める母性効果があります。母親の両方の対立遺伝子にフレームシフト変異があると、子は左巻きになります。
Lsdia1が作るformin(フォルミン)は、細胞骨格を構成するアクチン繊維の形成を促し、微小管を安定させます。アクチンは胚の細胞の変形や細胞分裂に関わり、微小管は右巻きの胚で見られる、分裂時の紡錘体の傾きに関係します。
初期分裂の回転が左右を分ける
胚の初期には、大きな細胞から小さな細胞が生じる「らせん卵割」が起きます。右巻きの胚では、小さな細胞が分裂と同時に時計回りに回転し、細胞がらせん状に配置されます。
左巻きの胚では、初期の細胞は中立的な配置を保ち、紡錘体も放射状に並びます。回転は分裂の溝が入り込む段階まで遅れ、右巻きとは異なる経過をたどります。
研究で調べた右巻きの胚はすべて45度の回転を完了しましたが、左巻きで完了した胚は54%でした。回転が不完全だった胚の生存率は53%で、右巻きの胚が健康な幼体まで育った割合は90%でした。
左巻きが少ない理由として挙げられる要因
モノアラガイの集団では、右巻きが約98%、左巻きが約2%とされています。左巻きの胚で回転が遅れたり不完全になったりすることが、生育のばらつきや生存率の差につながる可能性があります。
左巻きの個体では、Lsdia1のエクソン3にある1塩基の欠失が報告されています。この変異によって途中で翻訳を止める終止コドンが生じ、フォルミンの機能が失われます。遺伝子を標的にしたCRISPR実験も、Lsdia1の機能と巻き方向の関係を裏付けました。
初期発生の違いに加え、交尾のしやすさも巻き方向の偏りに関係する可能性があります。巻き方向が異なる個体では殻や生殖器の位置が反対になり、交尾が難しいと考えられてきました。一方、別のカタツムリでは、巻き方向が異なる個体同士の交尾も確認されています。
巻き方向の違いを越える交尾も
日本産のカタツムリ、Euhadraでは、右巻きのEuhadra aomoriensisと左巻きのEuhadra quaesitaは、以前は別種と考えられていました。異なる巻き方向の個体では生殖器の位置が鏡像のように異なるため、通常の向かい合った交尾は難しいと見られていました。
しかし、両種の個体が生殖器をねじり、向かい合った姿勢で交尾する例が見つかりました。研究者らは巻き方向が異なる個体間の交尾を5例確認し、その中には左巻きのE. quaesitaと右巻きのE. senckenbergianaの組み合わせも含まれます。
DNAを広範囲に調べるRAD-seqでも、巻き方向が異なる個体間で遺伝子が移動している証拠が得られました。交尾と遺伝子の移動はまれながら起きており、巻き方向だけでは種を分けられない場合があることを示しています。